
Brassage génétique en terminale SVT – Cours et croisements corrigés
Comment reconnaître un brassage interchromosomique ou intrachromosomique dans un exercice de terminale SVT ? Pour interpréter un croisement-test, retrouve d’abord les associations d’allèles des parents. Compare ensuite les quatre classes de descendants et calcule la proportion de recombinants. Trois croisements corrigés t’entraînent à justifier chaque étape.
Le brassage interchromosomique combine les chromosomes issus de différentes paires. Le brassage intrachromosomique recombine des allèles sur un même chromosome grâce au crossing-over. Les résultats d’un croisement-test permettent d’étudier la transmission de deux gènes.
Télécharger le cours et les exercices (PDF)8 pages A4. Cours pages 1 et 2, énoncés pages 3 à 5, corrigés pages 6 à 8.
Les bases pour comprendre le brassage génétique
Gène, allèle et locus
Un allèle est une version d’un gène. Le locus est sa position sur un chromosome. Pour les deux gènes étudiés ici, on note les allèles A et a, puis B et b. Un individu de génotype Aa Bb est hétérozygote pour les deux gènes. Un gamète reçoit un allèle par locus, par exemple A et b. On écrit alors Ab pour décrire la combinaison portée par ce gamète.
Génotype et phénotype dans les exercices
Les exercices supposent une dominance complète et une expression distincte des deux caractères. A domine a et B domine b. Le phénotype A– désigne le caractère associé à A chez un hétérozygote Aa ou un homozygote AA. Le phénotype aa révèle le caractère récessif. Dans un tableau de descendants, A– B– signifie que les deux caractères dominants sont visibles.
Le brassage agit pendant la méiose
La méiose sépare les chromosomes homologues lors de la première division, puis sépare les chromatides sœurs lors de la seconde division. Elle forme des cellules haploïdes. Les mutations peuvent produire de nouveaux allèles. La méiose permet de combiner différemment ceux qui sont déjà présents. Lors de la fécondation, la rencontre de deux gamètes ajoute une étape de combinaison des allèles.
Brassage interchromosomique et assortiment indépendant
Les paires homologues s’orientent indépendamment
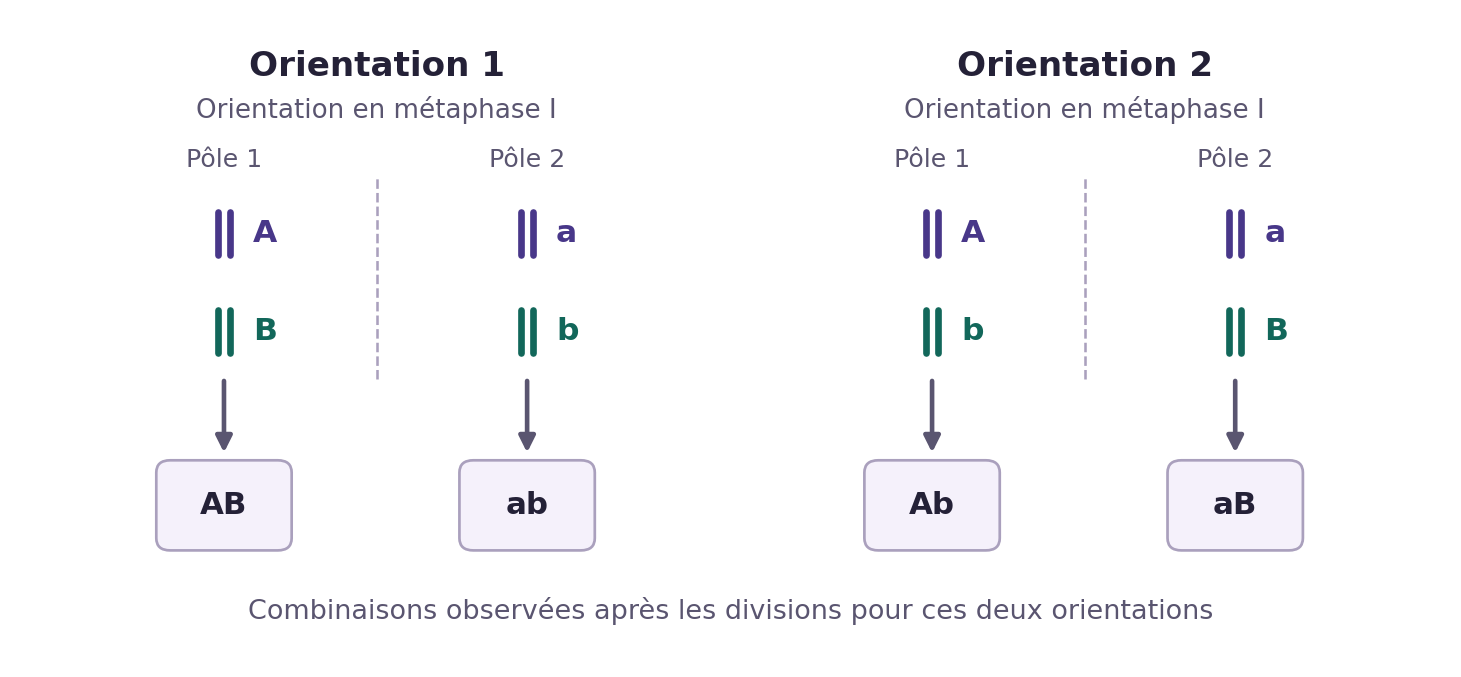
En métaphase I, les paires de chromosomes homologues s’alignent. L’orientation d’une paire est indépendante de celle d’une autre. En anaphase I, les homologues se séparent. Si A/a et B/b sont portés par des paires différentes, le chromosome portant A peut être associé à celui qui porte B ou à celui qui porte b dans les produits de la méiose.
Les quatre combinaisons sont attendues en proportions voisines
Pour un double hétérozygote Aa Bb, chaque allèle d’un locus a une probabilité de 1/2 d’être reçu par un gamète dans le modèle mendélien. Quand les deux loci s’assortissent indépendamment, les probabilités se multiplient. AB, Ab, aB et ab ont donc chacun une probabilité de 1/4. Cette répartition est attendue sur un ensemble de méioses. Le schéma montre deux orientations possibles à la première division.
Brassage intrachromosomique et crossing-over
Un crossing-over échange des segments entre chromatides
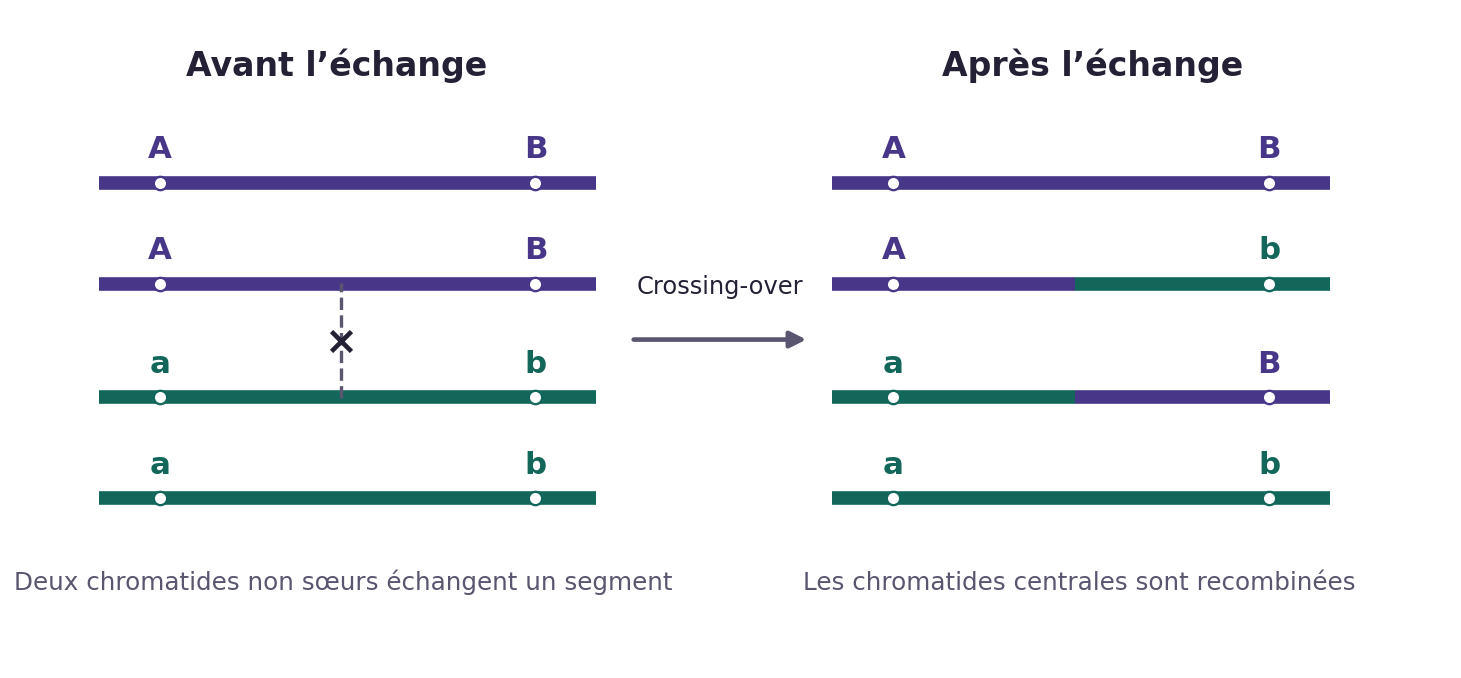
En prophase I, les chromosomes homologues sont appariés. Un crossing-over est un échange réciproque de segments entre deux chromatides non sœurs de la même paire. Un échange situé entre les loci A/a et B/b peut modifier les associations d’allèles. Si les chromosomes portent initialement AB et ab, une chromatide peut devenir Ab et une autre aB. Les deux chromatides qui n’ont pas participé à cet échange gardent AB et ab.
La phase indique où se trouvent les allèles
La notation AB/ab indique que A et B sont associés sur un homologue, et a et b sur l’autre. On parle de couplage. Dans la phase Ab/aB, appelée répulsion, A est associé à b et a à B. Les deux phases correspondent au génotype Aa Bb. Pour retrouver les classes parentales, lis le croisement qui a produit le double hétérozygote.
Une fréquence de recombinaison s’interprète dans un modèle
Quand les deux loci sont liés et suffisamment proches, les classes parentales sont plus fréquentes que les classes recombinées dans les conditions usuelles du croisement-test. La fréquence de recombinaison théorique augmente jusqu’à une limite de 50 % dans le modèle mendélien. Un résultat proche de 50 % est compatible avec des gènes sur des chromosomes distincts ou avec des loci très éloignés sur un même chromosome. Les deux situations peuvent donner des transmissions statistiquement indépendantes.
| Repère | Brassage interchromosomique | Brassage intrachromosomique |
|---|---|---|
| Ce qui se répartit ou s’échange | Chromosomes de paires différentes | Segments de chromatides homologues non sœurs |
| Moment déterminant | Orientation en métaphase I, séparation en anaphase I | Crossing-over pendant la prophase I |
| Résultat typique dans un croisement-test | Quatre classes voisines de 25 % pour deux loci qui s’assortissent indépendamment | Deux classes parentales majoritaires si les deux loci sont liés et suffisamment proches |
Comment réussir un croisement-test
Le parent testeur rend la transmission lisible
Le croisement-test associe ici un double hétérozygote Aa Bb à un double homozygote récessif aa bb. Le testeur transmet toujours ab. Chaque descendant reçoit donc son autre combinaison d’allèles du double hétérozygote. Par exemple, Aa bb provient d’un gamète Ab fécondé par un gamète ab. Sous les hypothèses de l’exercice, le phénotype A– bb permet de reconnaître ce gamète.
Le croisement étudié donne les classes parentales
Retrouve les gamètes des deux lignées qui ont produit le parent hétérozygote. Si elles sont AA BB et aa bb, elles transmettent AB et ab. Si elles sont AA bb et aa BB, elles transmettent Ab et aB. Dans chaque cas, les deux autres combinaisons sont les recombinants pour ce couple de gènes. Cette démarche fonctionne même lorsque tu changes de phase entre deux expériences.
Le calcul porte sur les deux classes recombinées
Additionne leurs effectifs, divise par l’effectif total des quatre classes, puis multiplie par 100. Pour 72 et 78 recombinants sur 1 000 descendants, on obtient (72 + 78) ÷ 1 000 × 100 = 15 %. Le résultat estime la fréquence des gamètes recombinés produits par l’hétérozygote dans ce croisement. Les exercices supposent une détection et une survie comparables entre les classes.
Rédiger une conclusion à partir des effectifs
- Écrire les gamètes des parents. Identifie les allèles reçus par le double hétérozygote. Dans le croisement-test, note séparément le gamète constant du testeur et les quatre combinaisons possibles de l’autre parent.
- Traduire les phénotypes en gamètes. Reconstitue l’allèle fourni par l’hétérozygote pour chaque caractère. Avec le testeur ab, les descendants A– bb correspondent à Ab. Les descendants aa B– correspondent à aB.
- Calculer les proportions utiles. Calcule d’abord le total. Compare les quatre classes et identifie leurs origines. Si tu calcules la recombinaison, place la somme des deux classes recombinées au numérateur.
- Conclure en citant des valeurs. Rédige une phrase qui relie le croisement, le résultat et son interprétation. Par exemple, 15 % de recombinants et deux classes parentales majoritaires soutiennent l’hypothèse de gènes liés. Pour des écarts modestes autour d’un quart dans chaque classe, formule une conclusion de compatibilité avec l’assortiment indépendant.
Trois exercices corrigés de croisement-test en terminale SVT
Les trois études portent sur des gènes autosomiques. Les données sont simulées. Commence par écrire les gamètes des lignées de départ avant d’ouvrir les corrigés.
1. Croisement-test de deux gènes indépendants
Prévoir les gamètes, traduire les phénotypes et interpréter une répartition proche de 1:1:1:1.
On croise deux lignées fictives AA BB et aa bb. Leur descendant F1, Aa Bb, est croisé avec un testeur aa bb. Les deux caractères suivent la dominance définie dans le cours. On cherche à savoir si la répartition observée est compatible avec l’assortiment indépendant.
| Phénotype observé | A– B– | A– bb | aa B– | aa bb |
|---|---|---|---|---|
| Descendants | 126 | 119 | 123 | 132 |
Questions
- Quels gamètes le testeur transmet-il ? Quelles combinaisons de l’hétérozygote sont attendues dans le modèle d’assortiment indépendant ?
- Associe chacune des quatre classes de descendants à son génotype et au gamète transmis par F1.
- Calcule la proportion de chaque classe et compare-la à la répartition attendue. Que suggèrent les effectifs ?
- Par rapport aux lignées de départ, identifie les deux combinaisons recombinées et calcule leur proportion totale.
Afficher le corrigé du croisement 1
- Le testeur transmet toujours ab. Le testeur est homozygote récessif pour les deux gènes, donc tout gamète porte a et b. Si A/a et B/b s’assortissent indépendamment, F1 produit AB, Ab, aB et ab avec une probabilité de 1/4 pour chaque combinaison. On obtient 1/4 en multipliant les probabilités 1/2 des deux allèles transmis.
- Chaque classe permet de retrouver le gamète de F1. AB donne Aa Bb, donc A– B–. Ab donne Aa bb, donc A– bb. aB donne aa Bb, donc aa B–. ab donne aa bb. Dans chaque cas, les allèles du testeur sont a et b. Ils laissent apparaître les caractères donnés par les allèles du gamète de F1.
- Les quatre proportions sont proches d’un quart. L’effectif total est de 500 descendants. Dans l’ordre du tableau, les proportions sont 25,2 %, 23,8 %, 24,6 % et 26,4 %. Le modèle prévoit 125 descendants par classe si on applique exactement 25 % à 500. Les variations autour de 125 sont compatibles avec l’assortiment indépendant dans cet échantillon.
- Les combinaisons recombinées représentent 48,4 %. Les lignées AA BB et aa bb transmettaient AB et ab à F1. Les deux autres combinaisons sont Ab et aB. Leur proportion dans la descendance est (119 + 123) ÷ 500 × 100 = 48,4 %. Cette valeur proche de 50 % correspond au cas de quatre classes de fréquence voisine.
À retenir. Le modèle prévoit 25 % pour chacune des quatre classes et 50 % pour les deux classes recombinées prises ensemble.
2. Gènes liés et calcul de la fréquence de recombinaison
Retrouver la phase des allèles et expliquer le rôle d’un crossing-over entre deux loci.
Chez un autre organisme fictif, deux lignées AA BB et aa bb donnent un hybride F1 Aa Bb. On réalise un croisement-test avec aa bb. Les effectifs ont été regroupés selon les combinaisons transmises par F1, déduites du phénotype des descendants.
| Gamète de F1 | AB | Ab | aB | ab |
|---|---|---|---|---|
| Descendants | 424 | 72 | 78 | 426 |
Questions
- Retrouve les associations parentales à partir des lignées. Si les deux gènes sont liés, comment s’écrit la phase de F1 ?
- Calcule la proportion des classes parentales et celle des classes recombinées. Compare-les aux valeurs attendues pour un assortiment indépendant.
- Pour une méiose avec un crossing-over unique entre les deux loci, représente les quatre chromatides obtenues et indique lesquelles ont changé d’association.
- Rédige une conclusion qui relie les effectifs observés à la position relative des deux gènes.
Afficher le corrigé du croisement 2
- F1 porte les combinaisons AB et ab. Le premier parent transmet AB et l’autre transmet ab. Dans le modèle de deux gènes sur la même paire de chromosomes, la phase de F1 s’écrit AB/ab. AB et ab sont les classes parentales et Ab et aB les classes recombinées. La phase vient du croisement qui a produit F1.
- Les classes recombinées représentent 15 %. Les effectifs parentaux totalisent 424 + 426 = 850 descendants, soit 85 %. Les recombinants totalisent 72 + 78 = 150 descendants, soit 15 % sur 1 000. Dans le modèle d’assortiment indépendant, les classes parentales totalisent 50 % et les classes recombinées totalisent aussi 50 %.
- Deux chromatides deviennent recombinées. Après réplication, les quatre chromatides portent AB, AB, ab et ab. Si deux chromatides homologues non sœurs échangent un segment entre les loci, les chromatides qui participent à l’échange deviennent Ab et aB. Les deux autres portent encore AB et ab. Les quatre associations du schéma sont AB, Ab, aB et ab.
- Deux classes majoritaires et 15 % de recombinants soutiennent une liaison. Les classes AB et ab, héritées des lignées de départ, rassemblent 850 descendants sur 1 000. Les associations Ab et aB sont minoritaires. Cette répartition soutient l’hypothèse de deux loci liés sur une même paire de chromosomes. Un crossing-over entre les loci permet d’expliquer la présence des associations recombinées.
À retenir. La fréquence calculée concerne les gamètes recombinés pour les loci A et B. Un crossing-over unique entre ces loci modifie deux chromatides sur quatre dans la méiose représentée.
3. Même génotype et associations parentales différentes
Comparer un couplage et une répulsion et regrouper correctement deux croisements-tests.
On étudie les mêmes deux gènes chez un troisième organisme fictif. Dans la série X, le parent F1 vient du croisement AA bb × aa BB. Dans la série Y, il vient de AA BB × aa bb. Les deux F1, de génotype Aa Bb, sont croisés séparément avec des testeurs aa bb dans des conditions comparables.
| Série | AB | Ab | aB | ab |
|---|---|---|---|---|
| X | 51 | 202 | 198 | 49 |
| Y | 201 | 51 | 47 | 201 |
Questions
- Écris les deux associations héritées des lignées de départ dans X et Y. Indique la phase de chaque F1 dans un modèle de gènes liés.
- Pour chaque série, identifie les deux classes recombinées et calcule leur fréquence totale.
- Additionne X et Y colonne par colonne. Quelle impression donnerait ce tableau cumulé si tu l’analysais seul ?
- Calcule une fréquence de recombinaison commune en regroupant les recombinants une fois identifiés dans chaque série.
- Rédige une conclusion qui explique pourquoi ces deux croisements sont compatibles avec des gènes liés malgré des classes parentales différentes.
Afficher le corrigé du croisement 3
- X est en répulsion et Y est en couplage. Dans X, AA bb donne Ab et aa BB donne aB. F1 est donc Ab/aB. Dans Y, AA BB donne AB et aa bb donne ab. F1 est donc AB/ab. Dans les deux cas, l’écriture Aa Bb indique les allèles possédés. La phase précise ceux qui se trouvent ensemble sur chaque homologue.
- Les fréquences sont 20 % dans X et 19,6 % dans Y. Dans X, AB et ab sont les recombinants. Ils totalisent 51 + 49 = 100 sur 500, donc 20 %. Dans Y, les recombinants sont Ab et aB. Ils totalisent 51 + 47 = 98 sur 500, donc 19,6 %. Les deux valeurs sont proches malgré le changement de phase.
- Les colonnes cumulées semblent presque équilibrées. On obtient 252 AB, 253 Ab, 245 aB et 250 ab. Les quatre totaux sont proches de 250 sur 1 000. Chaque colonne mélange une classe parentale dans une série et une classe recombinée dans l’autre. Ce regroupement efface l’information sur les associations héritées dans chaque F1.
- Le regroupement selon l’origine donne 19,8 %. Les deux séries comportent 100 + 98 = 198 recombinants sur 500 + 500 = 1 000 descendants. La fréquence commune estimée est 198 ÷ 1 000 × 100 = 19,8 %. Cette mise en commun suppose que les deux séries étudient les mêmes loci dans des conditions comparables.
- La phase change et les classes parentales restent majoritaires. Les deux croisements donnent environ 80 % de descendants issus des associations parentales de la série. X transmet surtout Ab et aB, tandis que Y transmet surtout AB et ab. Les résultats soutiennent une liaison des deux gènes et un brassage intrachromosomique à l’origine des classes minoritaires.
À retenir. Pour combiner les données, identifie d’abord les classes parentales et recombinées dans chaque croisement.
Questions fréquentes sur le brassage génétique
Quelle différence entre brassage inter et intrachromosomique ?
Le brassage interchromosomique associe des chromosomes issus de paires différentes lors de la première division de méiose. Le brassage intrachromosomique résulte d’un échange entre chromatides non sœurs de chromosomes homologues en prophase I.
Comment reconnaître les phénotypes parentaux dans un croisement-test ?
Remonte aux lignées qui ont produit l’hétérozygote. Déduis les associations d’allèles qu’elles ont transmises puis cherche les classes correspondantes. Dans le modèle de deux loci liés et assez proches, ces classes sont généralement les plus fréquentes.
À quoi sert le double homozygote récessif ?
Il transmet une combinaison constante, comme ab. Elle permet de déduire celle que l’hétérozygote a donnée à chaque descendant à partir du phénotype, lorsque la dominance et l’expression des caractères sont connues.
Pourquoi peut-on observer quatre classes même avec des gènes liés ?
Deux classes conservent les associations parentales. Les deux autres résultent des recombinaisons entre les loci. Pour interpréter la liaison, compare les fréquences des quatre classes et utilise l’origine des associations.
Que signifie une fréquence proche de 50 % ?
La transmission s’accorde avec un assortiment indépendant. Cela peut correspondre à des gènes sur des chromosomes différents ou à des loci très éloignés sur un même chromosome. La taille de l’échantillon et les conditions du croisement aident à interpréter un écart mesuré.